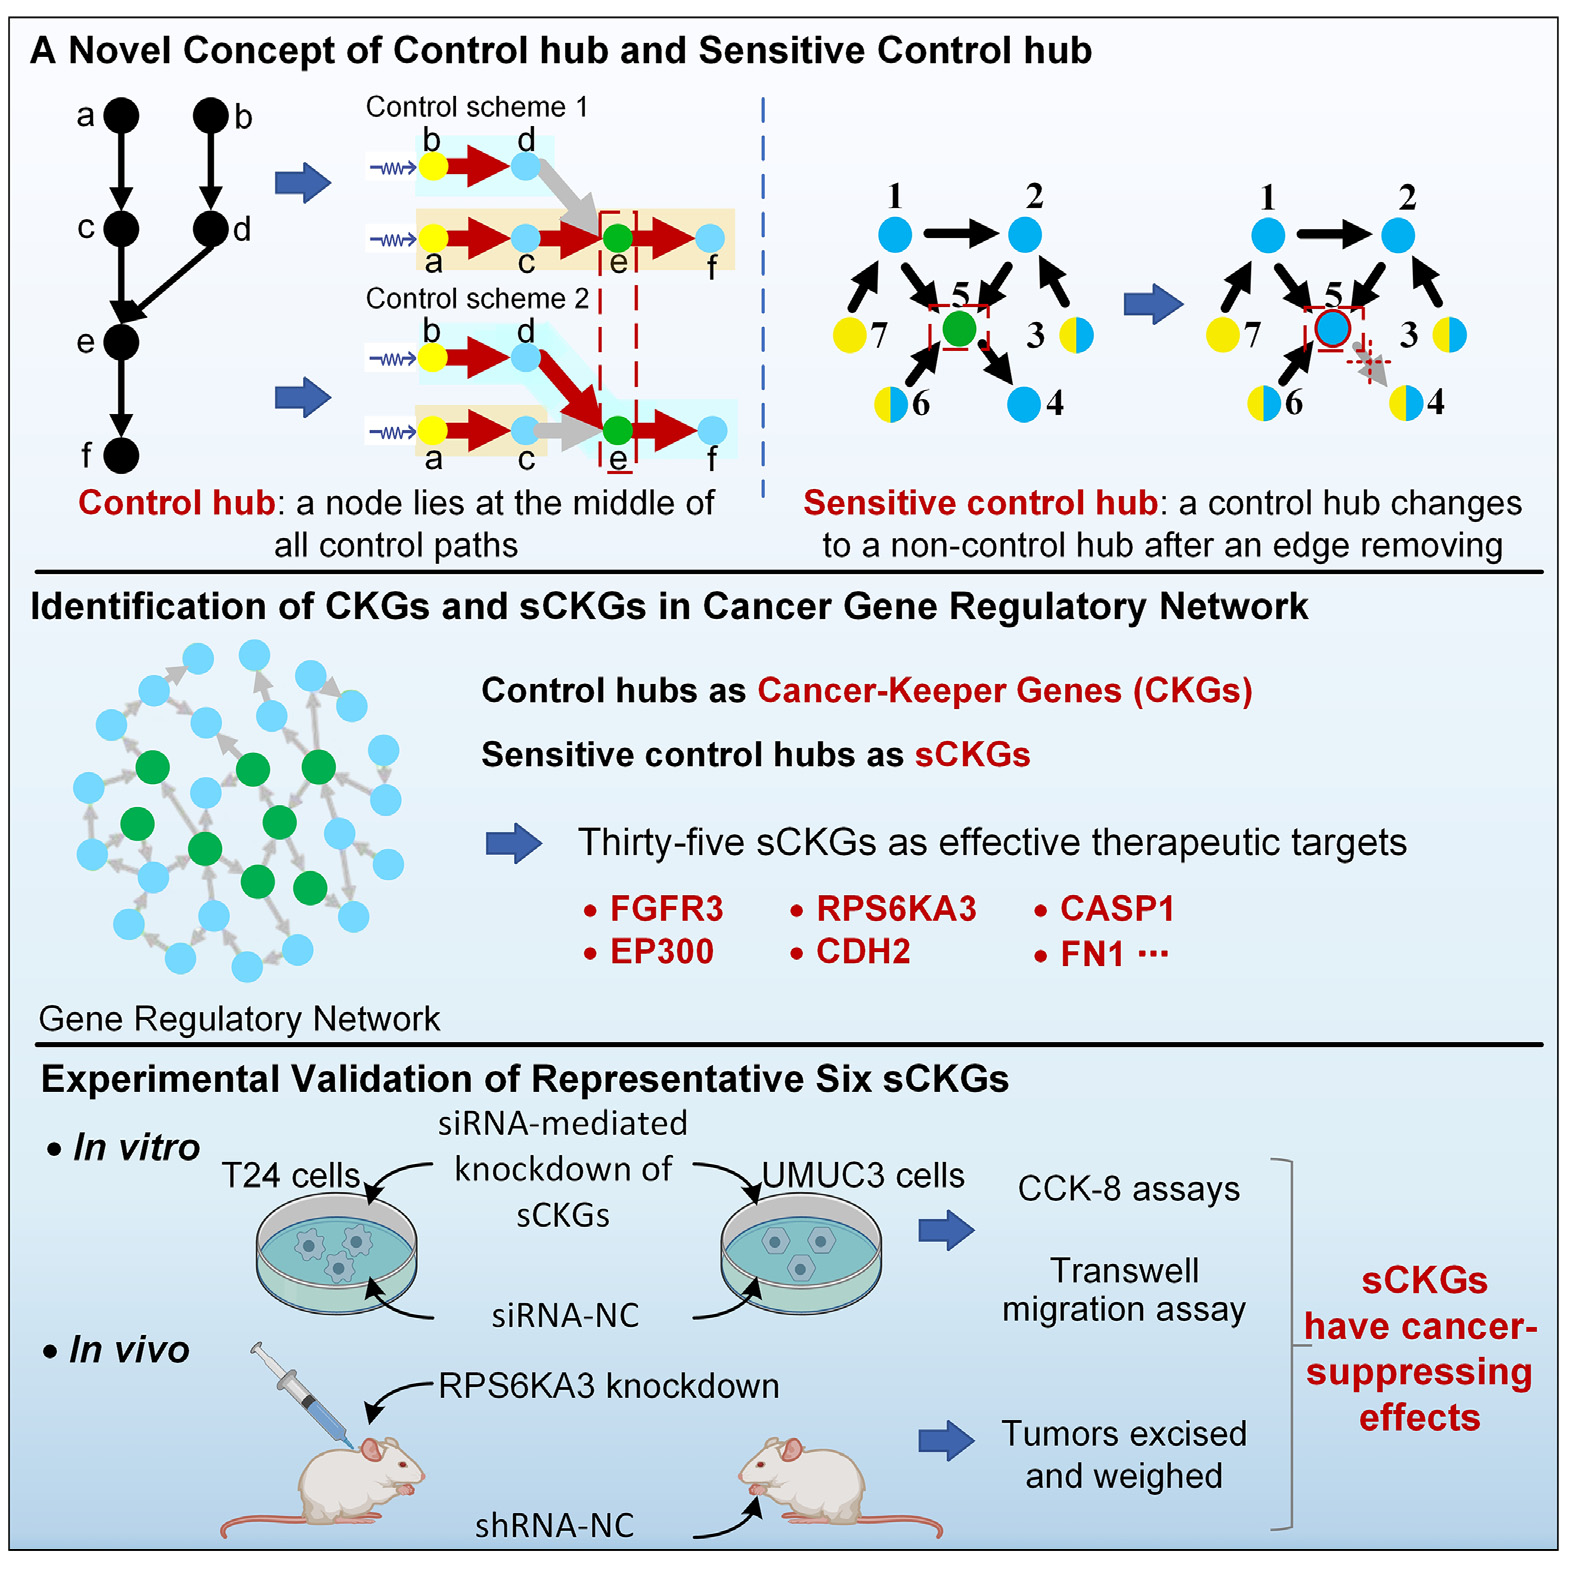
传统研究聚焦"点燃"癌变的驱动基因——这项研究反过来问:哪些基因在持续维持癌状态?通过网络结构可控性分析,找到 660 个"控制枢纽"基因,并在膀胱癌实验中验证其功能。
"点火键"
因突变/改变推动肿瘤发生
按突变频率筛选 → 候选趋于饱和
"续航开关"
从网络控制结构看维持癌状态
按结构必经性筛选 → 新维度补充
两者可以重叠——CKG 提供的是不同于"看突变频率"的筛选视角。
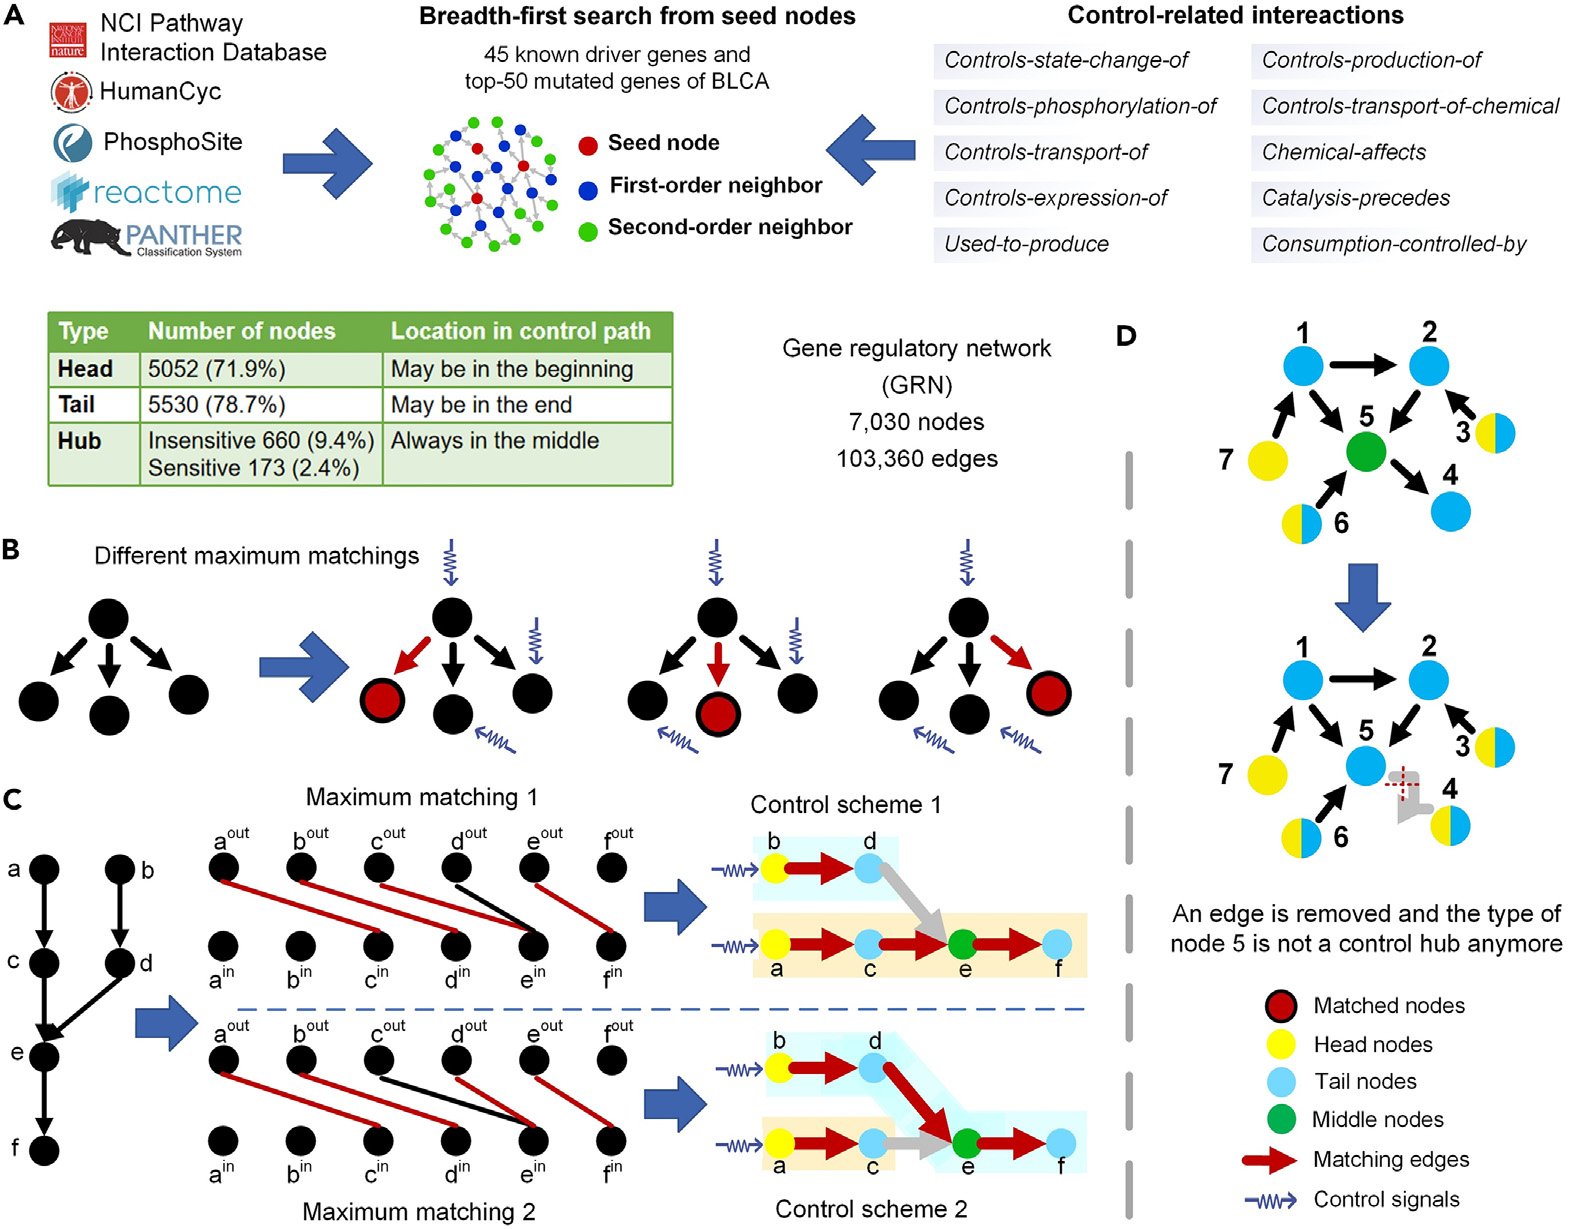
以 95 个膀胱癌种子基因(45 个已知驱动基因 + 50 个高频突变基因)为起点,从 5 个通路/互作数据库做广度优先搜索,纳入 10 类调控关系,构建有向基因调控网络。
数据库包括 NCI PID、PhosphoSite、HumanCyc、Reactome 与 PANTHER,涵盖磷酸化、转录调控、蛋白互作等多类关系。
从 5 个数据库、10 类调控关系出发,以 95 个膀胱癌种子基因做 BFS,得到 7,030 节点 × 103,360 有向边的 GRN。
用结构可控性理论,不枚举所有控制方案,而用多项式算法直接找出全部"控制枢纽"——660 个 CKG。
如果删除一条网络边就能让某个控制枢纽失效,则为 sCKG。共识别 173 个,类比"封一条匝道就变普通路口"。
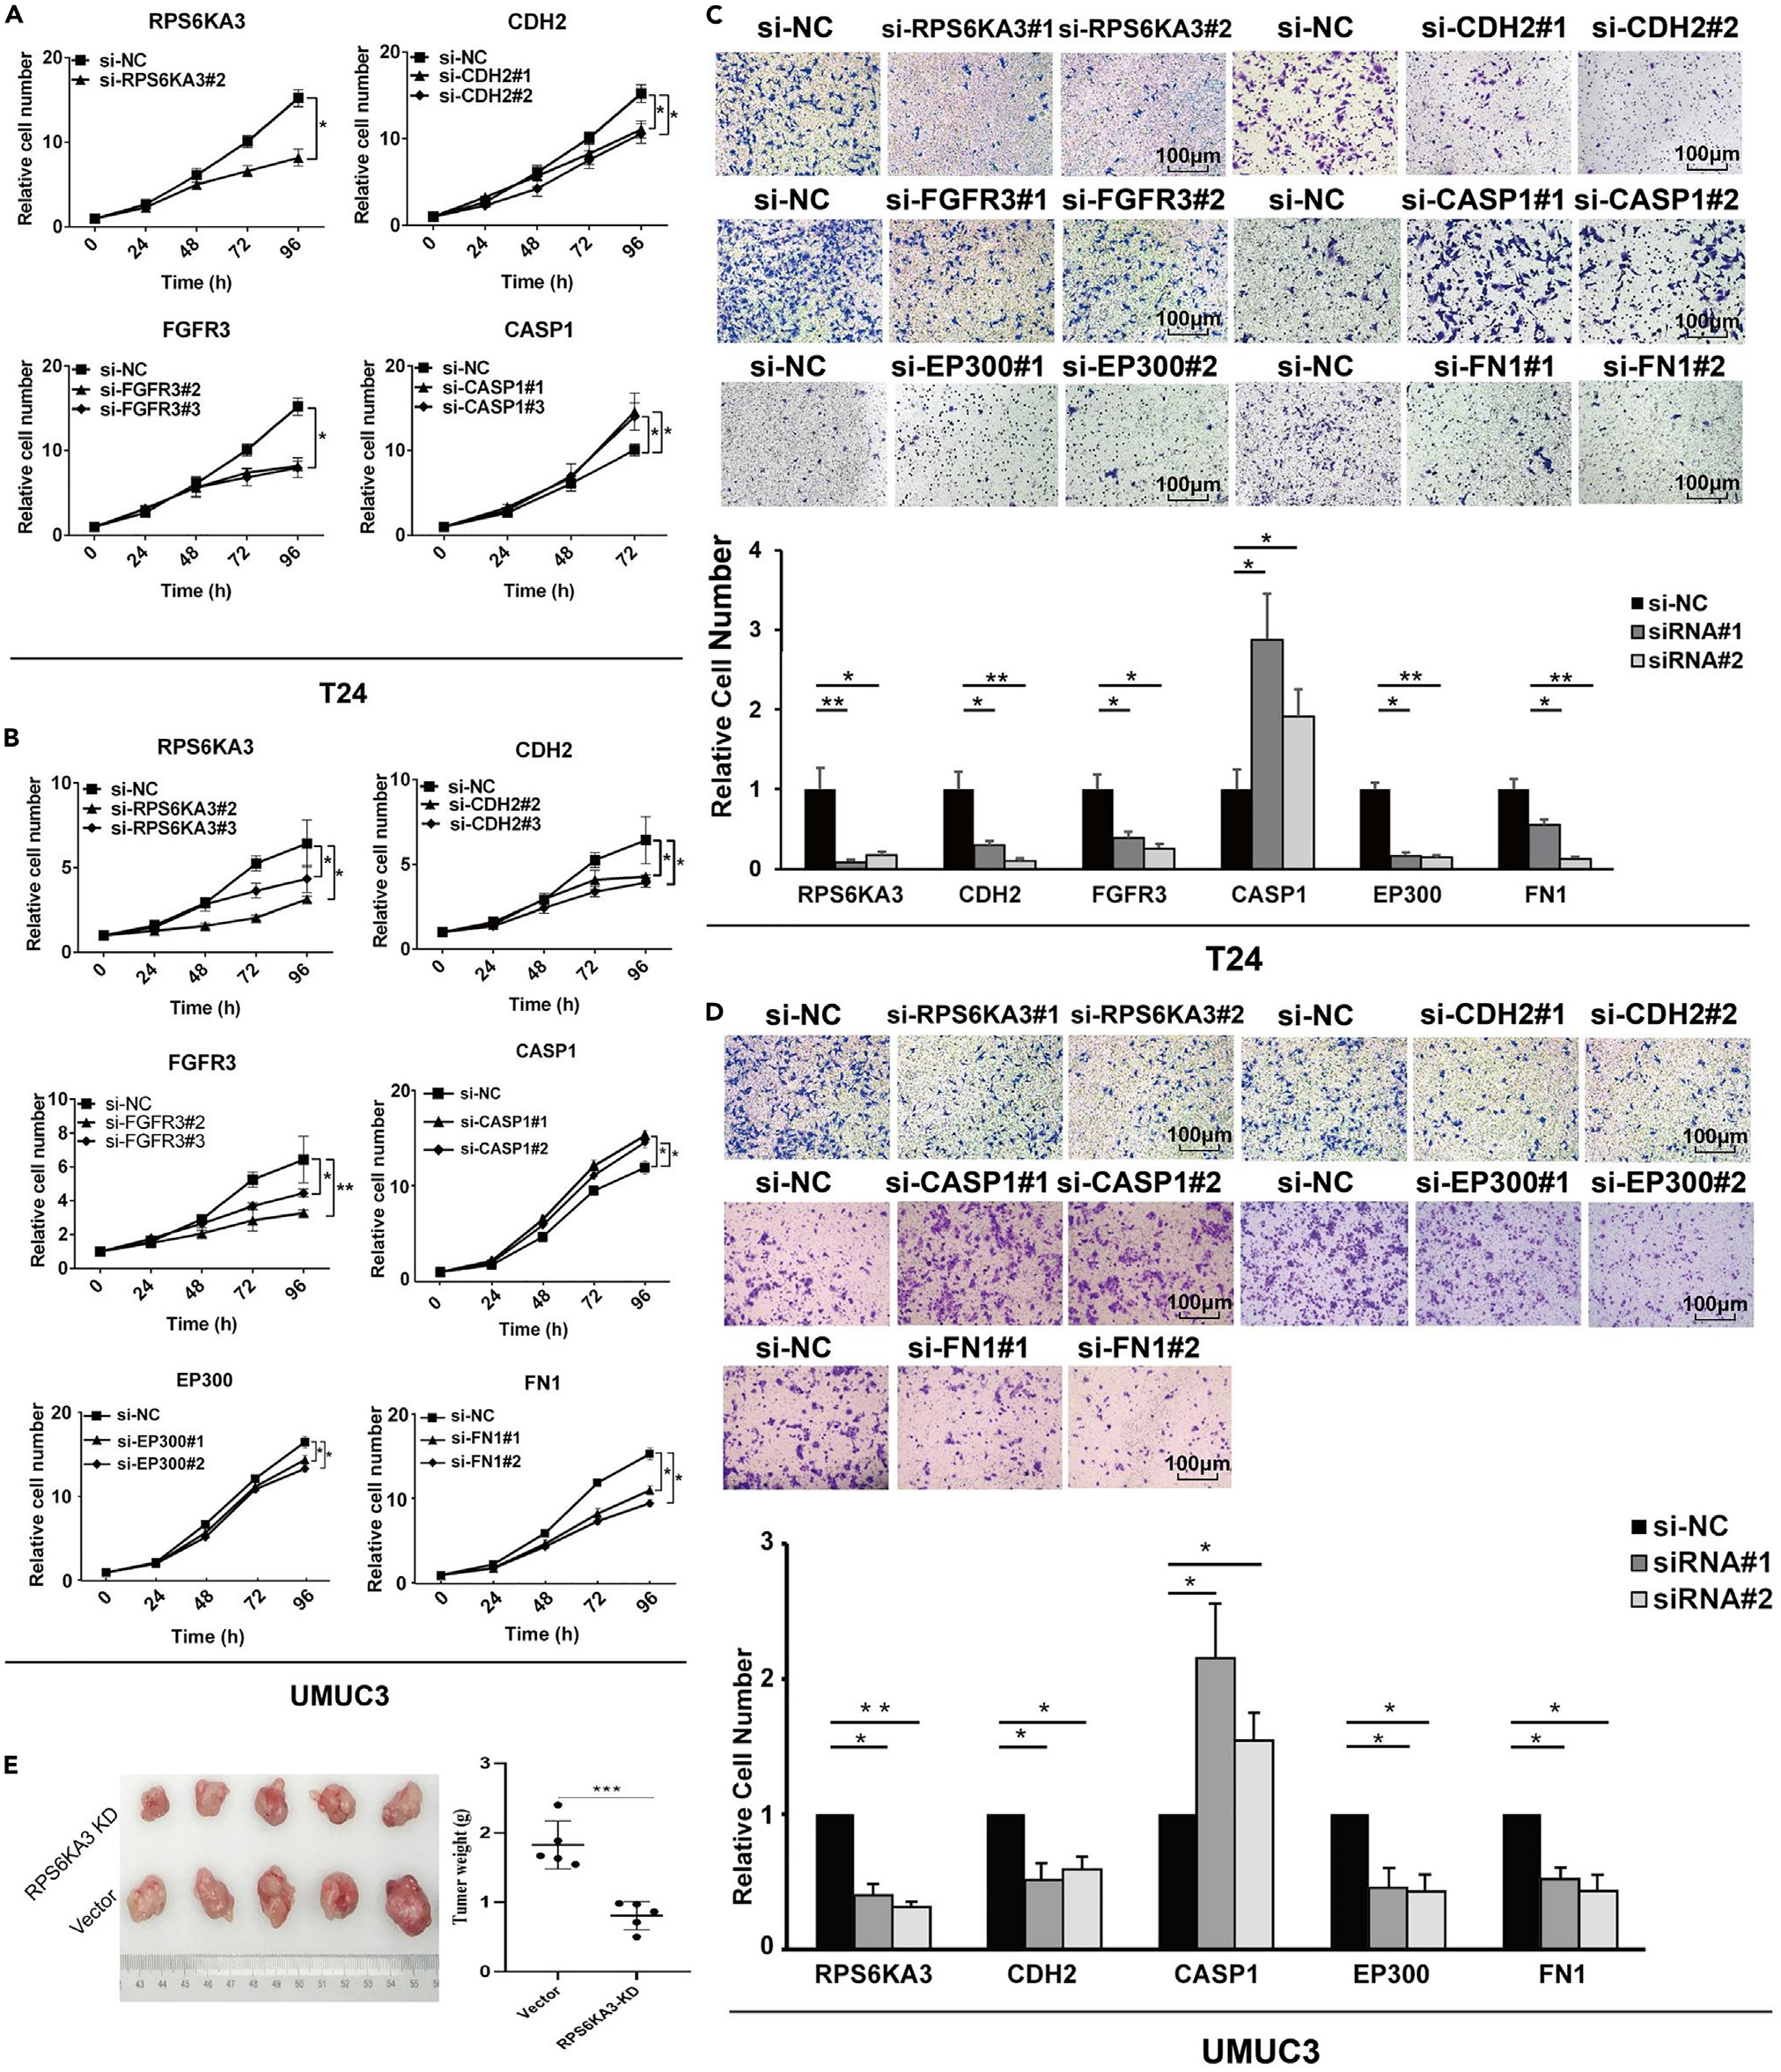
在 T24 与 UMUC3 膀胱癌细胞中敲低 6 个 sCKG,检测增殖/迁移;在小鼠移植瘤模型中验证 RPS6KA3。
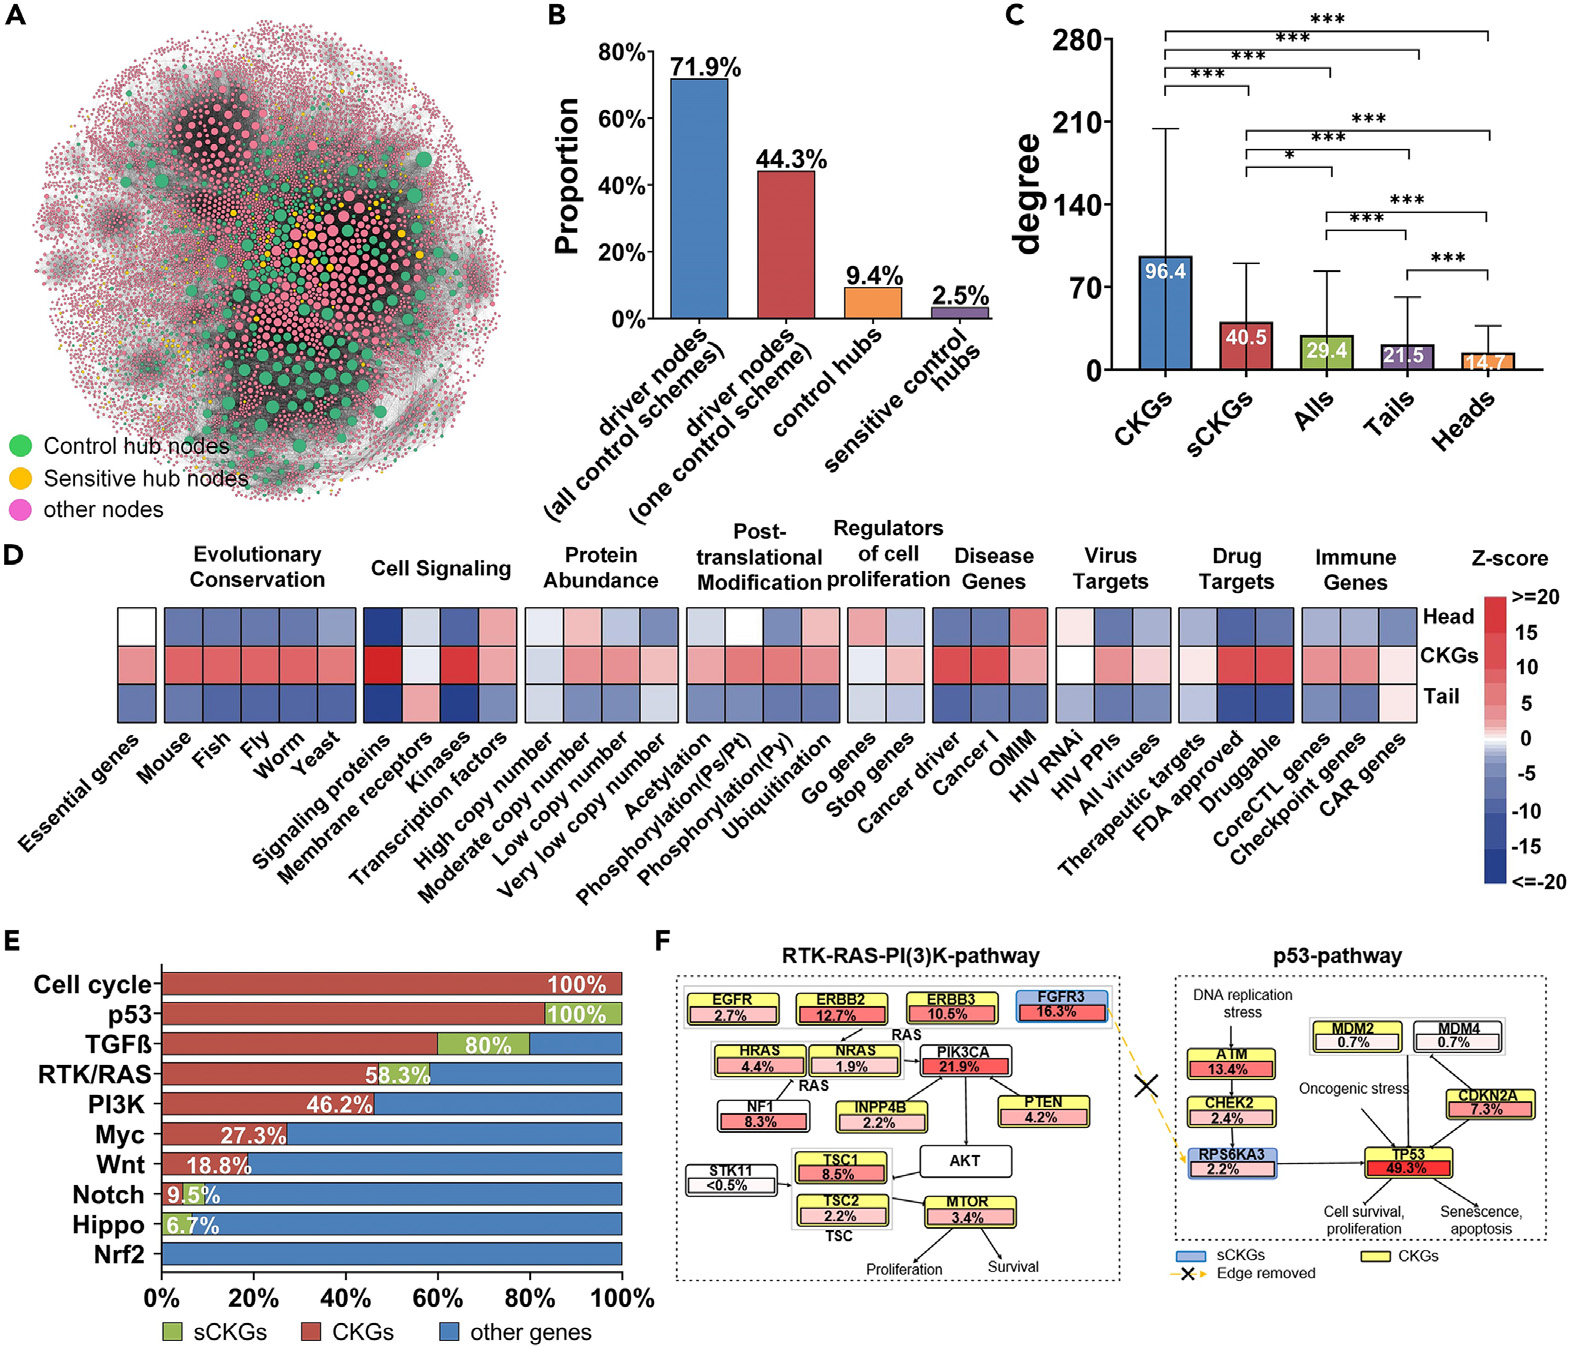
CKG 相比非 CKG 具有显著更高的网络连接度,在多个生物学维度上富集。
35 个优先 sCKG 候选中,30 个连接已知药物靶点、26 个连接癌症驱动基因、27 个连接免疫相关基因。
在 TCGA 的 10 条癌症信号通路中,细胞周期与 p53 通路基因 100% 都是 CKG;TGF-β 通路 80%、RTK/RAS 通路 58.3% 也是 CKG。
控制枢纽在必需性、保守性、信号传导、药物靶点、免疫调控等维度显著富集。27 个 CKG 为已知免疫治疗靶点。
sCKG 自身的突变频率和表达偏低,但其邻居基因的遗传改变与表达更高——只看突变频率容易漏掉它们。这正是网络视角的独特价值。
在膀胱癌细胞中敲低 6 个 sCKG(RPS6KA3、FGFR3、CDH2、EP300、FN1、Caspase-1),显著改变增殖/迁移,方向因基因而异。RPS6KA3 在小鼠模型中减小肿瘤体积与重量。
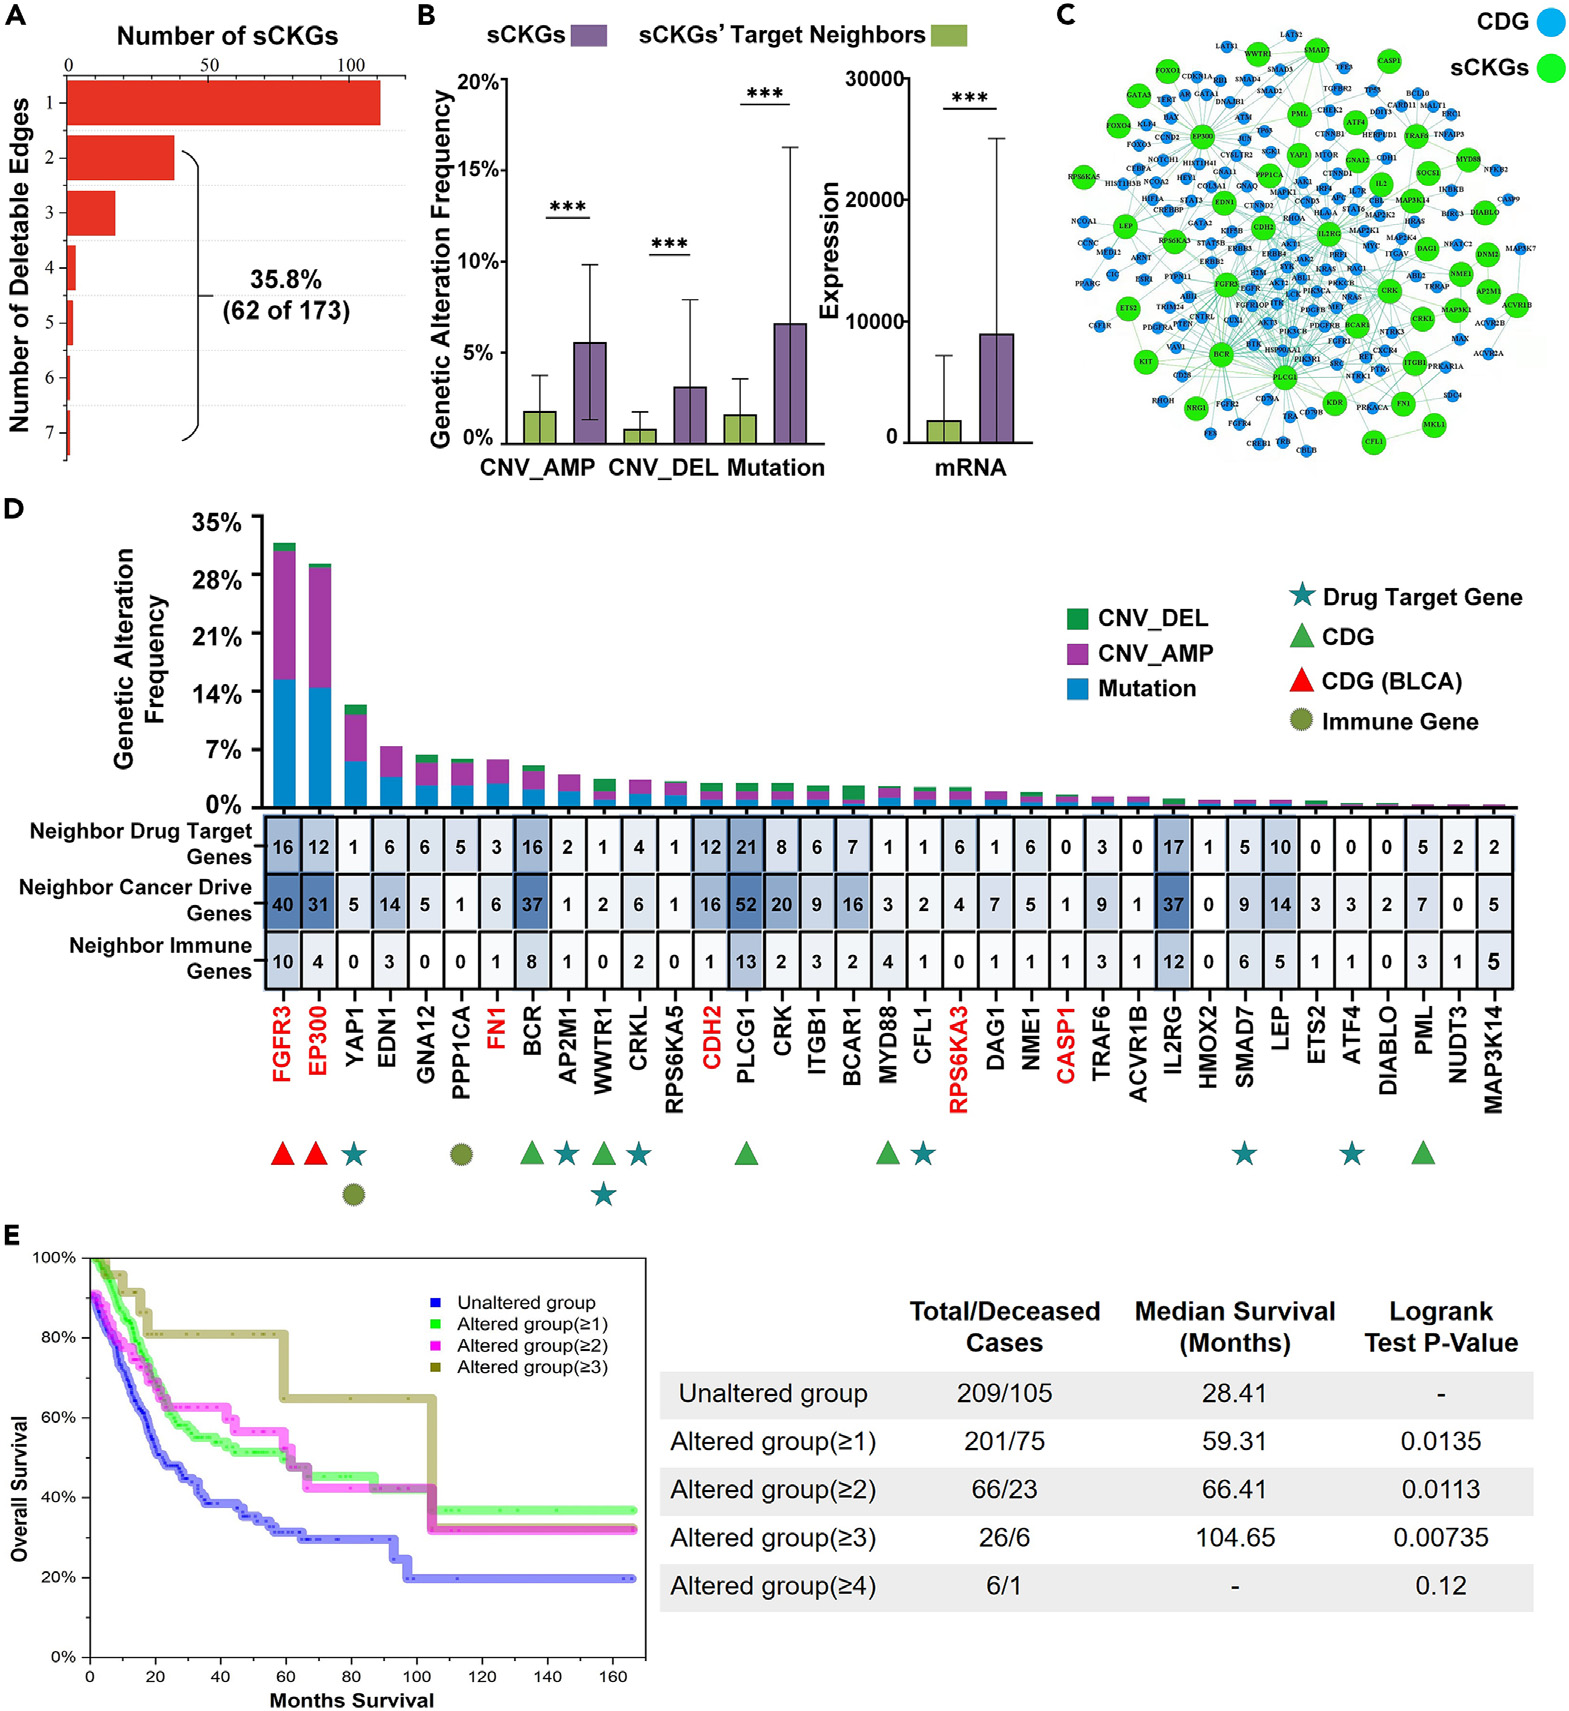
基于 TCGA 的 411 例膀胱癌患者数据,35 个优先 sCKG 中有遗传改变的数量越多,中位生存期越长(回顾性关联,非因果)。
这一反直觉的结果提示 sCKG 改变可能反映更高的免疫可见性或基因组不稳定性,但具体机制有待进一步研究。
在 T24 与 UMUC3 膀胱癌细胞中敲低 6 个 sCKG,其中 4 个(RPS6KA3、CDH2、CASP1、FN1)并非已知癌症驱动基因。结果显示效应方向因基因而异——CKG 是一种结构位置定义,不保证单一方向的功能。此外在宫颈癌(SiHa)和头颈癌(FaDu)细胞系中也验证了 AP2M1 和 BCAR1 等 sCKG。
从数千个驱动基因 → 660 CKG → 173 sCKG → 35 优先候选,提供系统化的筛选管线。
在膀胱癌细胞系与小鼠模型中验证了部分 sCKG 的功能影响,并在宫颈癌与头颈癌中进行了跨癌种初步验证。
TCGA 411 例膀胱癌中,35 个 sCKG 的遗传改变数量与生存期呈统计关联(回顾性,非因果)。
GRN 来自已知通路与蛋白互作数据,可能遗漏真实存在但尚未收录的调控关系。
pan-cancer 网络可能遮蔽特定癌种的关键调控,后续可用表达数据修剪为癌种特异网络。
尚未充分考虑 mRNA 表达、表观遗传、非编码 RNA 与肿瘤微环境等因素。
不同 sCKG 效应方向不一致,需机制研究与更多癌种/模型验证。
本页面用于科研科普与方法解读,不构成医疗建议或诊断/治疗依据。论文证据主要来自计算分析、细胞系实验与小鼠模型,对人体临床疗效与安全性尚未验证。任何健康决策请咨询专业医生。